
全文约 2,552 字,阅读约需 7 分钟
文献来源(INSCOPER 文献库标注:Super-Resolution (DRIM))
Arnould, C., Rocher, V., Saur, F. et al. Chromatin compartmentalization regulates the response to DNA damage. Nature 623, 183–192 (2023).
DOI:https://doi.org/10.1038/s41586-023-06635-y
图片使用说明:文中论文插图来自该文(Nature,开放获取,Creative Commons CC BY 4.0),未作内容改动,转载时保留作者、期刊与 DOI 标注。
导语
DNA 双链断裂(double-strand break, DSB,即 DNA 两条链在同一位置同时断开)是细胞最危险的损伤之一。人们早已在显微镜下看到:损伤后细胞核里会出现一个个“修复灶”,而且这些修复灶会彼此靠拢、融合。它们为什么要聚到一起?聚到一起是好事还是坏事?法国图卢兹 Gaëlle Legube 团队在 Nature 发表的这项工作,主要用 Hi-C 等基因组学手段回答了这个问题,并借助随机照明显微术(Random Illumination Microscopy, RIM),在活细胞中以超分辨率直接看到了修复灶的融合过程。本文重点梳理研究的主要发现,以及 RIM 在其中承担的具体角色。
研究背景:修复灶“抱团”的谜题
DSB 出现后,细胞会在断点周围约兆碱基(Mb)范围内的染色质上铺开一层磷酸化组蛋白 γH2AX,并招募 53BP1 等修复蛋白,形成显微镜下可见的“修复灶”(DDR focus)。此前已有研究发现,多个修复灶会在核内聚集成更大的结构,即 DSB 聚簇(DSB clustering)。但聚簇也有风险:两个断点被拉近后,可能被错误地接在一起,造成染色体易位(translocation)——这是许多肿瘤的基因组特征。因此,聚簇究竟有什么生物学功能,一直没有定论。
作者使用 DIvA 细胞系(在人 U2OS 细胞中表达可诱导的限制性内切酶 AsiSI,加入羟基他莫昔芬后可在基因组已知位置产生约 80 个强 DSB),从而能够把显微图像与基因组坐标一一对应起来分析。
研究发现一:受损 TAD 先“自我加固”,再在核内彼此相遇
拓扑关联结构域(topologically associating domain, TAD)可以理解为染色质折叠形成的、内部接触较频繁的“小房间”。差异 Hi-C(比较有无 DSB 时染色质三维接触的变化)显示:
含 DSB 的 TAD 内部接触明显增强,与相邻区域的接触减少——受损区域被“加固”和“隔离”起来;这一过程依赖 ATM 激酶和黏连蛋白(cohesin,一种环状蛋白复合物)介导的环挤出(loop extrusion,即 cohesin 沿染色质把 DNA 拉成环)。
不同受损 TAD 之间——无论在同一条还是不同染色体上——会在核内发生物理接触,即 DSB 聚簇;有些 TAD 会同时与多个受损 TAD 接触,形成“TAD 团簇”(TAD clique)。
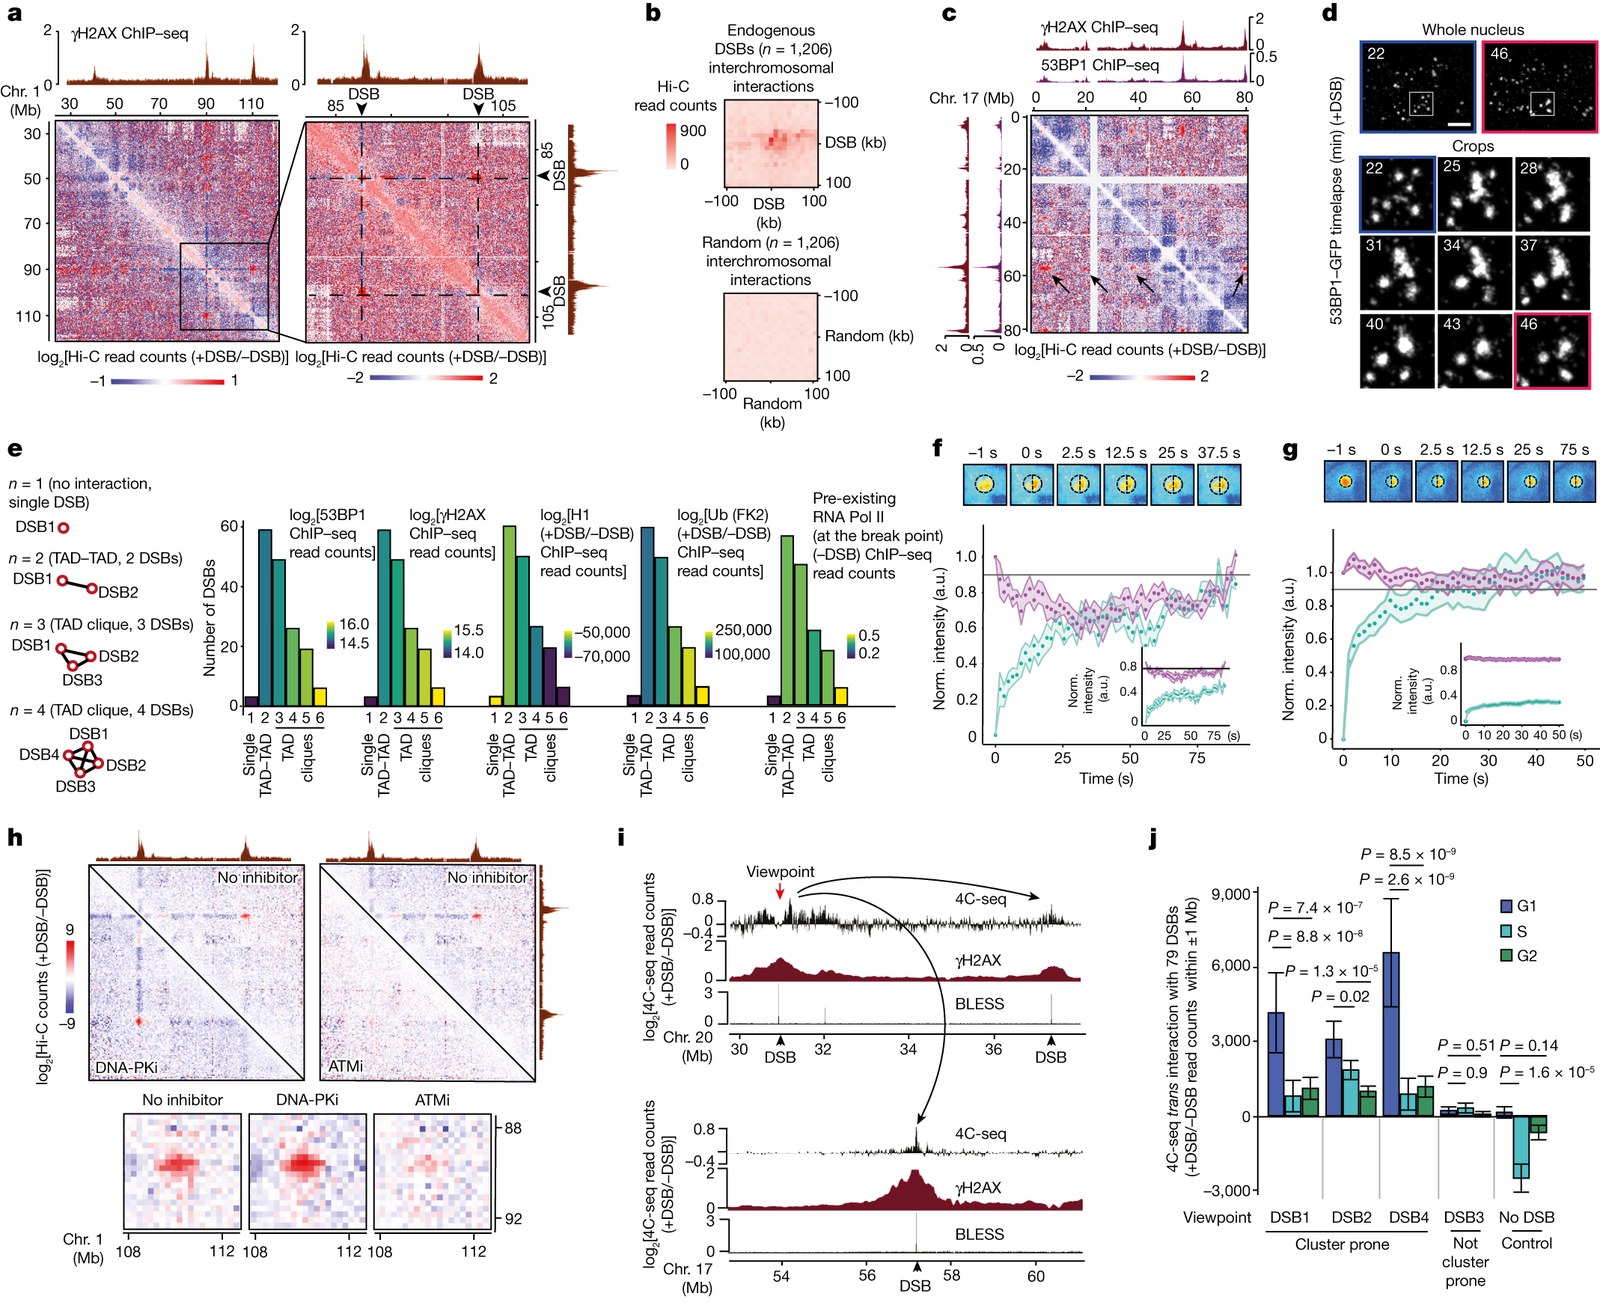
图1.受损 TAD 的聚簇受细胞周期调控、依赖 ATM 而不依赖 DNA-PK。a–c 为差异 Hi-C 结果,显示受损 TAD 之间的染色体内与染色体间接触;d 为 53BP1–GFP DIvA 细胞的 RIM 活细胞成像,DSB 诱导后连续拍摄,可见多个 53BP1 修复灶逐步靠拢、融合(数字为诱导后分钟数,标尺 5 µm);f–g 为 half-FRAP 实验(f:激光微辐照后 15 min;g:DSB 诱导后 4 h);h–j 为加入 DNA-PK 或 ATM 抑制剂后的差异 Hi-C,以及同步化细胞中的 4C-seq 结果。
来源:原文 Figure 2;Arnould et al., Nature 623, 183–192 (2023);https://doi.org/10.1038/s41586-023-06635-y(CC BY 4.0)
Hi-C 给出的是大量细胞的平均“接触频率”,而图1d 的 RIM 影像提供了单细胞、实时的直观证据:Hi-C 中“一个受损 TAD 与多个受损 TAD 相连”的现象,在活细胞中也能看到多个修复灶汇合的过程(对应原文补充视频 1–3)。
研究发现二:聚簇更像“聚合物–聚合物相分离”,而非液滴融合
近年有观点认为 53BP1 修复灶通过液–液相分离(liquid–liquid phase separation, LLPS)形成,像油滴一样融合。作者用两类实验检验这一点:
half-FRAP(只漂白修复灶的一半,观察荧光如何恢复):激光微辐照后 15 分钟的早期 53BP1 聚集表现出界面屏障,符合 LLPS;而 DSB 诱导 4 小时后的 53BP1 修复灶未检测到明显界面屏障。
基于 RIM 三维图像的融合动力学分析:作者从 RIM 获取的 3D 时间序列中挑选融合事件,计算修复灶形状的归一化长宽比随时间的弛豫。结果显示融合较慢,且多数不会变成圆球;测得的“毛细速度”约 0.003 µm/s,比典型 LLPS 凝聚体低约三个数量级(n = 5)。
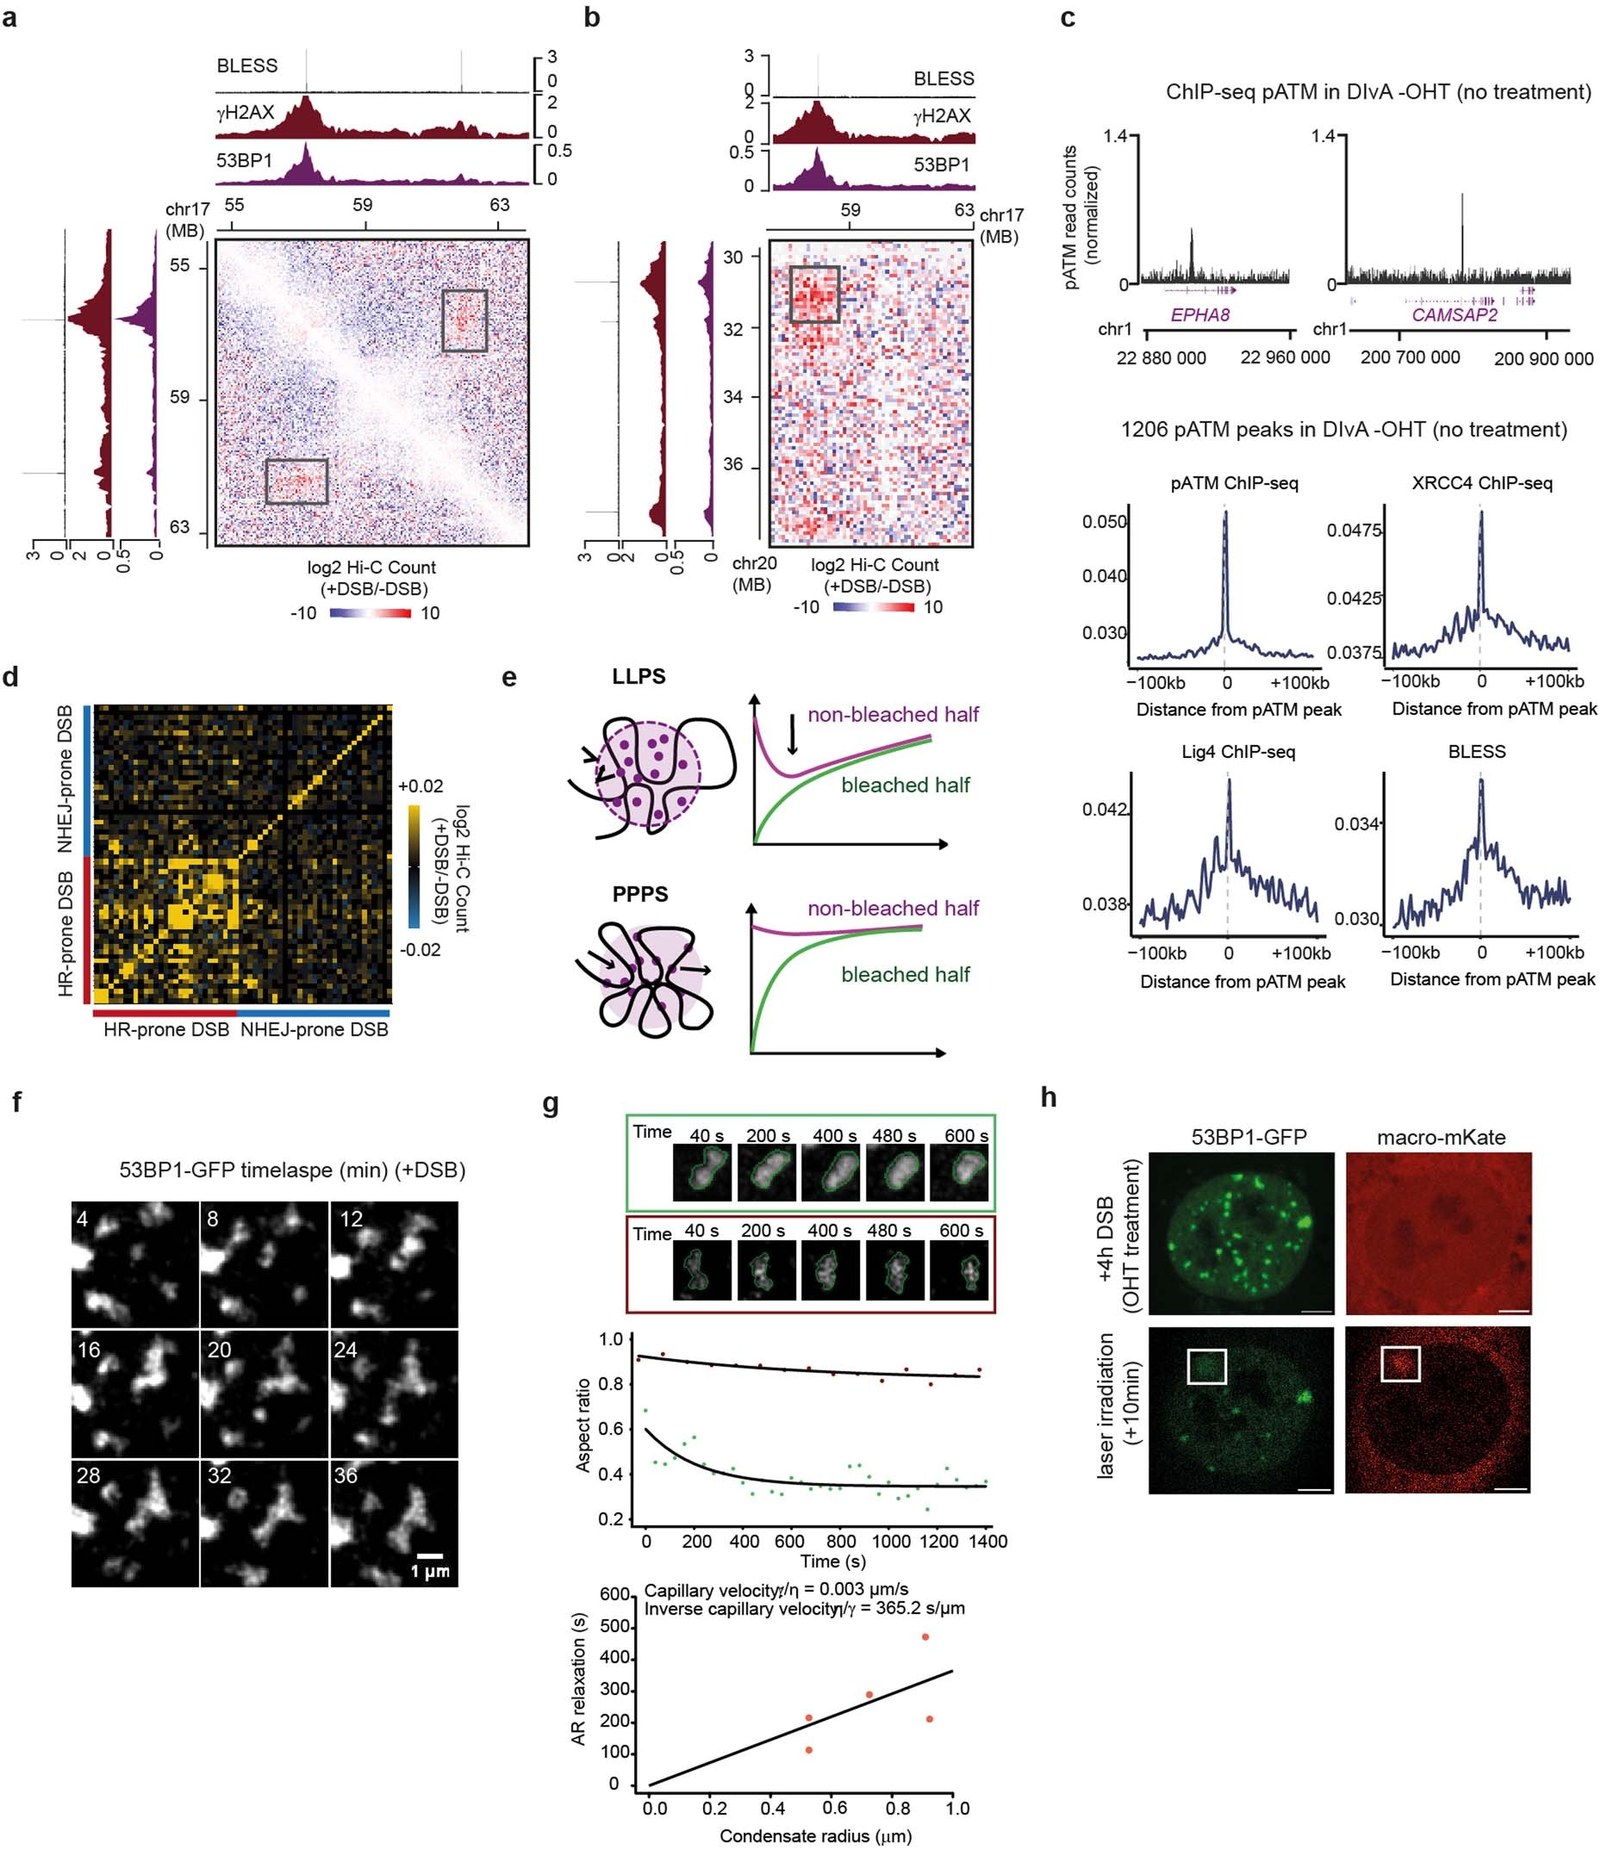
图2.晚期 DSB 聚簇更符合聚合物–聚合物相分离(PPPS)。e 为 LLPS 与 PPPS 两种模型示意;f 为 DSB 诱导 4 h 后的融合实例;g 为基于 RIM 图像对融合过程长宽比弛豫的定量,并由弛豫时间与修复灶尺寸关系得到逆毛细速度;h 显示晚期修复灶缺少 PAR 信号。
来源:原文 Extended Data Figure 2(CC BY 4.0)
据此,作者提出:早期 53BP1 聚集可能有 LLPS 参与,而晚期的受损 TAD 聚簇更符合聚合物–聚合物相分离(polymer–polymer phase separation, PPPS),即由结合在染色质上的 53BP1 分子之间的自相互作用驱动。需要注意,这是作者基于上述证据提出的机制模型,而非直接观测到的分子过程。
作者还用 RIM 拍摄了固定细胞中的 γH2AX 灶(图3):DNA-PK 抑制后 γH2AX 灶更大、更聚集;同时抑制 ATM 后聚集消失,Ripley 空间分析给出一致结论。
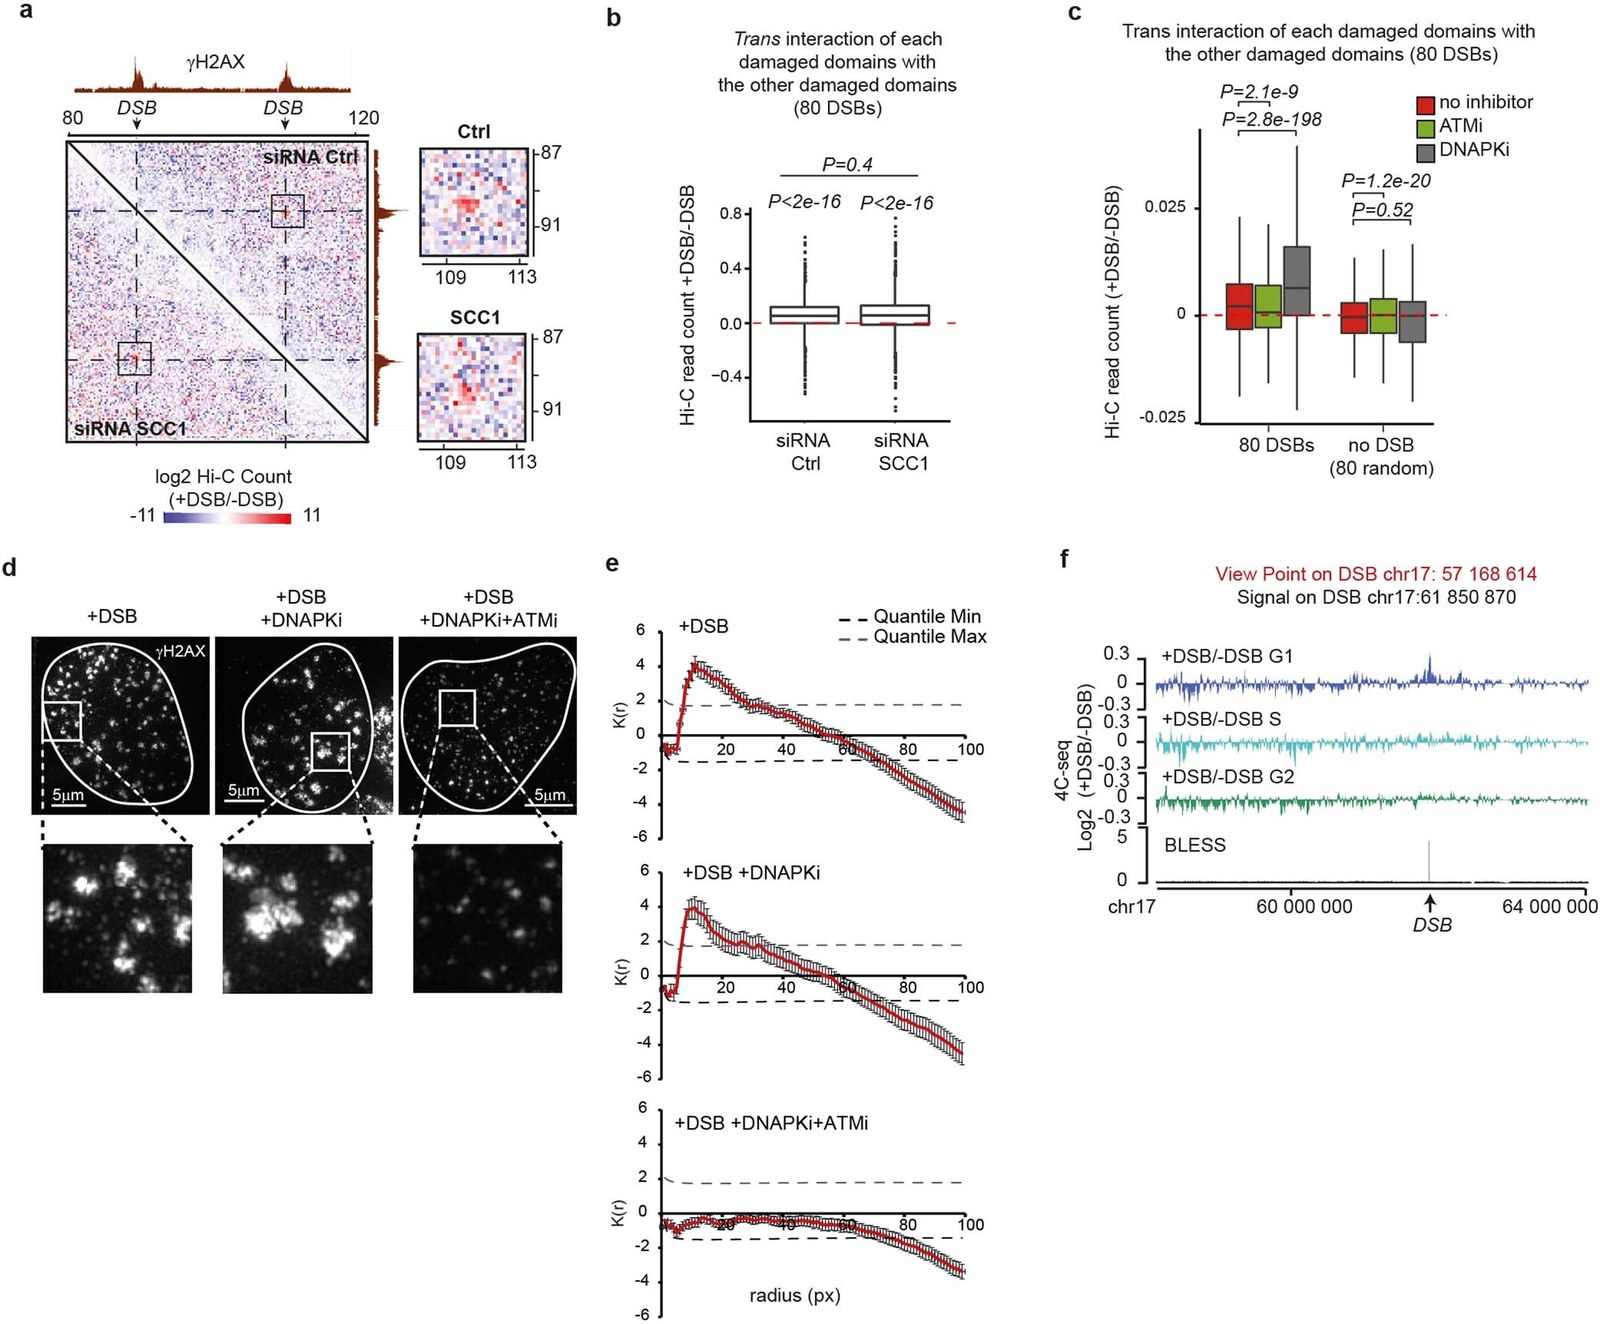
图3.DSB 聚簇依赖 ATM、不依赖 DNA-PK 和 cohesin,并在 G1 期增强。d 为 RIM 获取的 γH2AX 免疫荧光图像(标尺 5 µm),分别为单纯诱导 DSB、加 DNA-PK 抑制剂、同时加 DNA-PK 与 ATM 抑制剂;e 为对应的 Ripley 空间聚集分析。
来源:原文 Extended Data Figure 3(CC BY 4.0)
研究发现三:一个新的“D 区室”,招募 DNA 损伤应答基因
对差异 Hi-C 做主成分分析后,作者在 DSB 较多的染色体上识别出一个与 γH2AX 覆盖区高度相关的新染色质区室,命名为 D 区室(DSB-induced compartment)。关键发现包括:
D 区室不仅包含受损 TAD,还会招募一部分未受损、带有活跃转录标记的基因;其中富集 DNA 损伤应答(DDR)上调基因,如 GADD45A、PLK3;RNAscope 显示,D 区室基因 PLK3 的转录位点比非 D 基因(LPHN2、CDC42)更常与 γH2AX 灶共定位。
被招募进 D 区室的上调基因富含 R 环(R-loop,RNA 与 DNA 杂交形成的三链结构);过表达 RNase H1(降解 R 环)会减弱聚簇,敲低 RNase H1 则增强聚簇;敲低 SETX(一种解旋 R 环的酶)后 R 环累积,Hi-C 显示聚簇明显增强,DDR 上调基因的转录也随之增强。
敲低 LINC 复合体组分 SUN2(已知促进聚簇)会削弱 D 区室基因的激活,而不影响区室外的 DDR 基因。作者据此认为 D 区室有助于部分 DDR 基因的最佳激活。
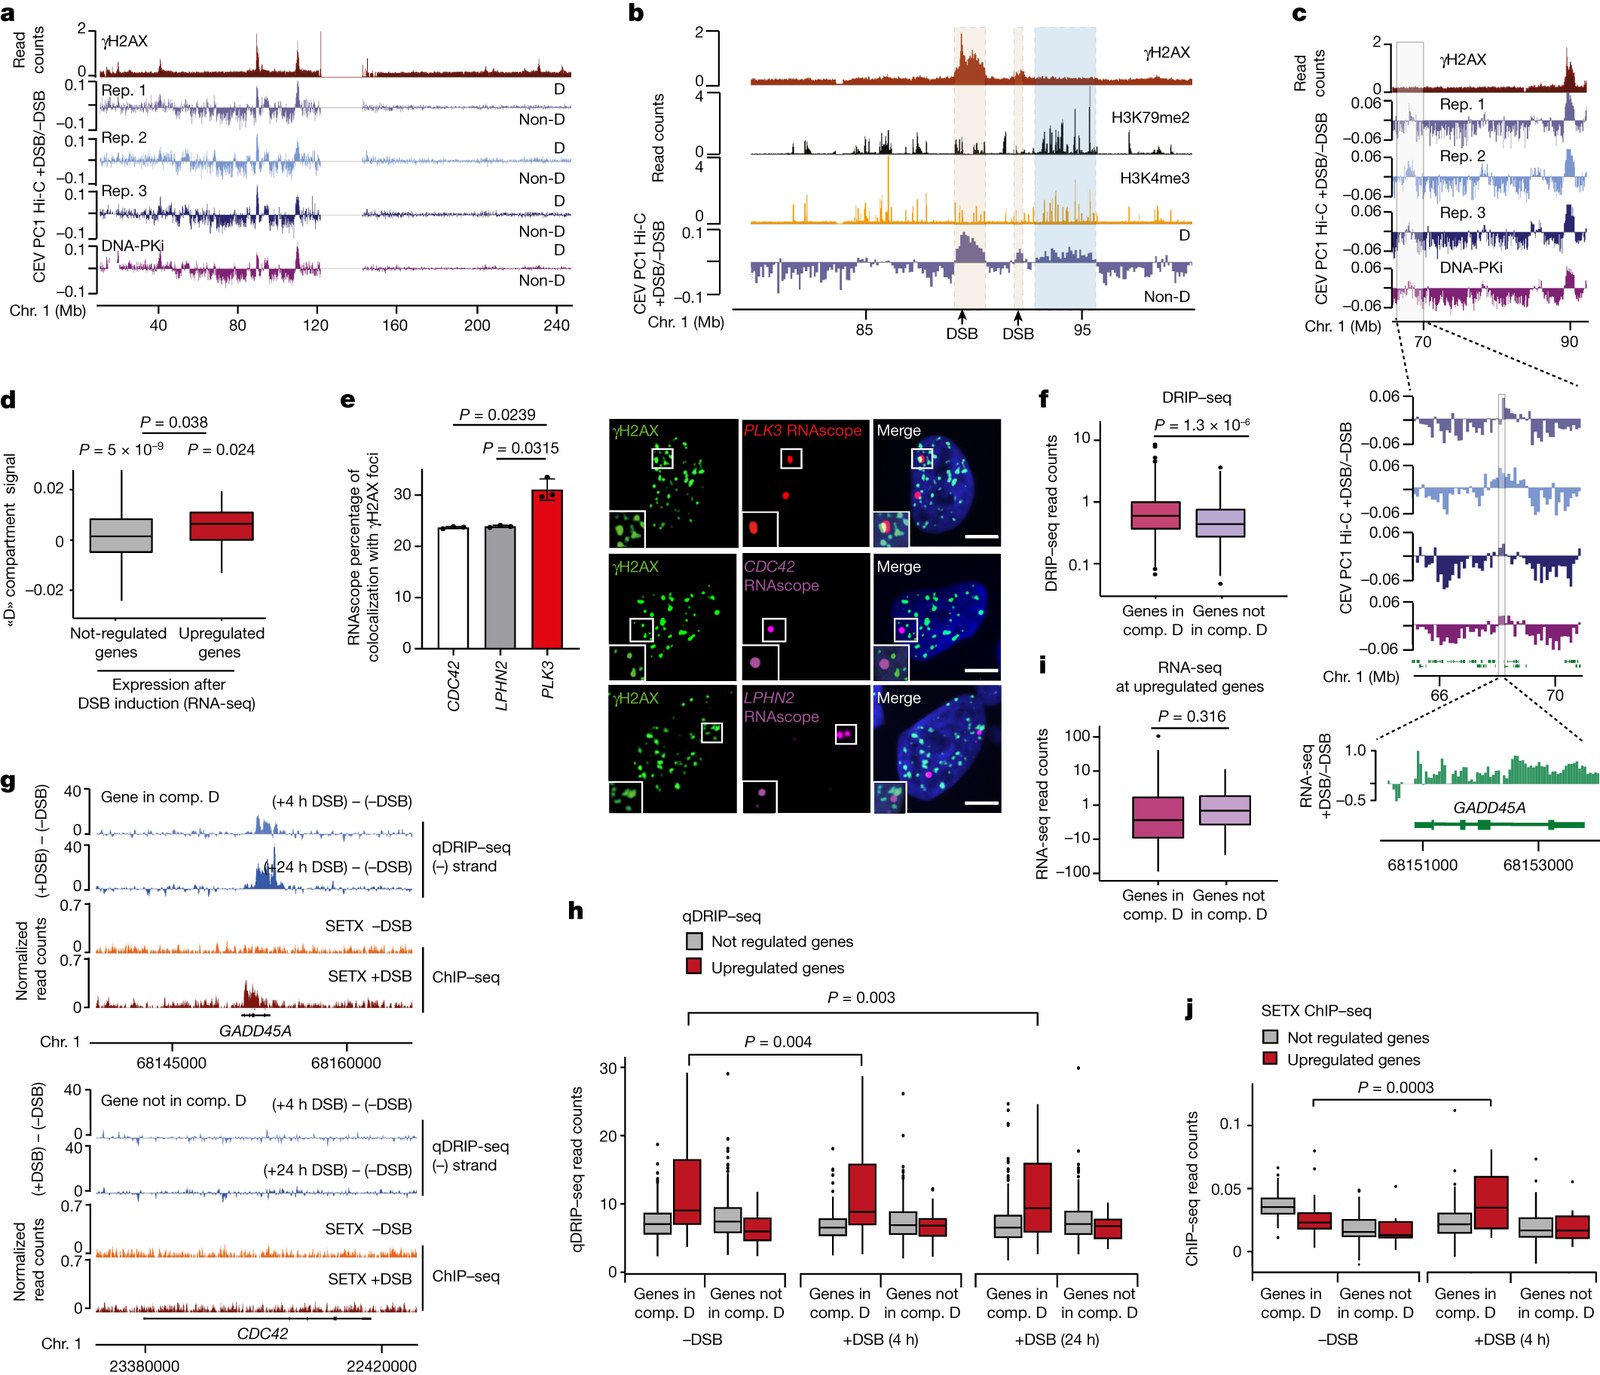
图4.DSB 诱导形成特异性的 D 区室。a–b 为 γH2AX ChIP-seq 与差异 Hi-C 第一主成分(CEV)轨迹,显示受损区域及部分未受损的活跃基因区域进入 D 区室;e 为 RNAscope 共定位定量;f–j 为 DRIP-seq、qDRIP-seq 与 SETX ChIP-seq 分析,显示 D 区室基因富含 R 环。
来源:原文 Figure 3(CC BY 4.0)
研究发现四:代价——易位风险上升
聚簇把原本相距很远的断点拉近,也提高了错误连接的机会。作者发现:G1 期、DNA-PK 抑制等增强聚簇的条件下,非法重连接频率升高;敲低 53BP1、SUN2、ARP2 则降低易位。进一步与 18 种肿瘤、1,493 例患者的易位断点数据比对,D 区室中的 DSB 上调基因与断点位置存在显著重叠。作者因此提出:DSB 诱导的染色体重排可能是一把“双刃剑”。
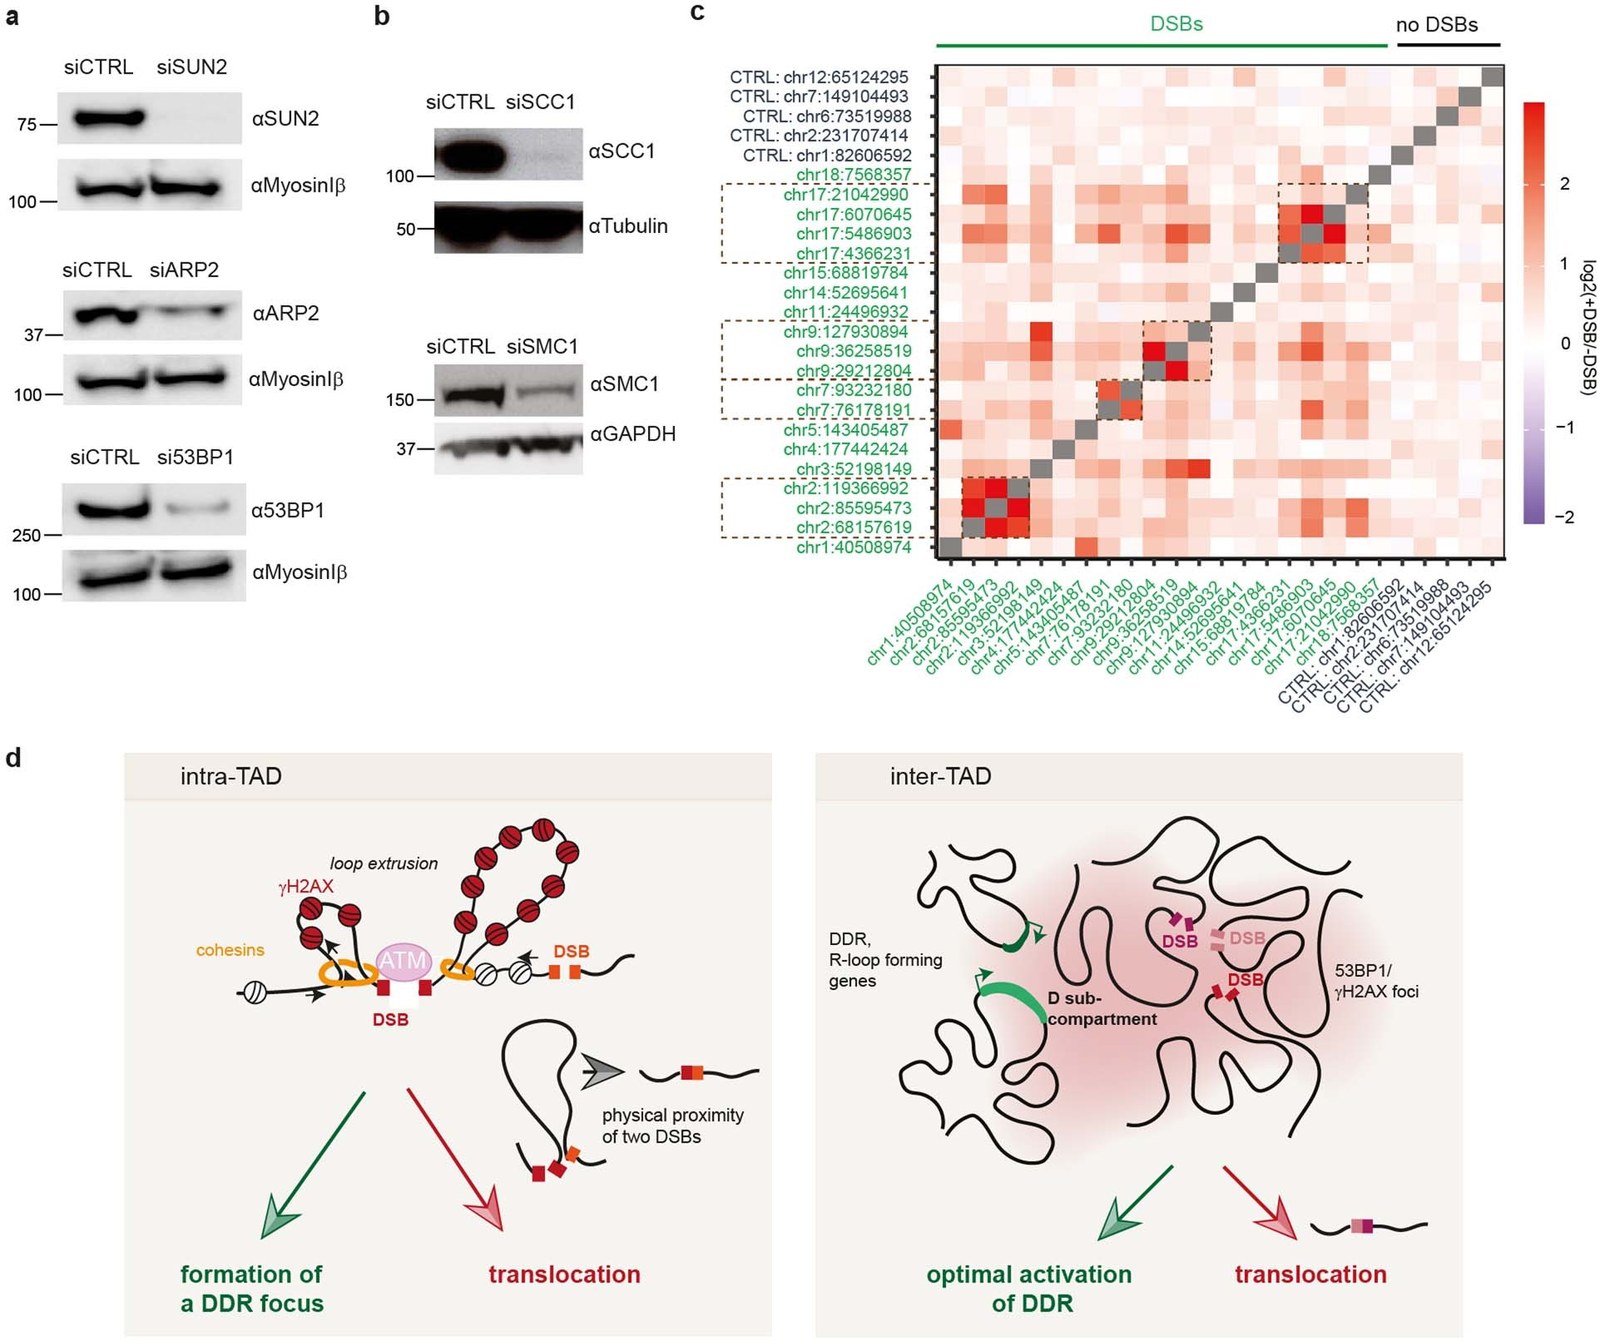
图5.补充数据中的总结模型(d):环挤出与受损 TAD 融合一方面促进 DDR 灶建立和部分 DDR 基因激活,另一方面也增加染色体内与染色体间易位的风险。a–c 为相关蛋白敲低效率与易位测序结果。
来源:原文 Extended Data Figure 8(CC BY 4.0)
局限与需要注意的地方
RIM 不是本文的主力手段。 核心结论主要来自 Hi-C、4C-seq、ChIP-seq、DRIP-seq 与 RNA-seq;RIM 提供的是活细胞层面的直观佐证(融合过程)和融合动力学的定量(n = 5 个融合事件),样本量有限。
模型系统特殊。 断点由 AsiSI 在特定位点人工诱导,部分结论已用依托泊苷(etoposide)诱导的 DSB 补充验证,但推广到其他损伤类型仍需更多证据。
机制与功能部分仍有推断成分。 PPPS 机制是与实验相符的模型;D 区室与肿瘤易位断点的重叠是统计相关,作者本人也用“may”表述其致癌意义。
图1 所示原文 Fig. 2d 的图注写“DSB 诱导后 20 min 开始、每 3 min 拍摄一次、共 1 h”,而方法部分写“所有补充视频的时间分辨率为 40 s”,二者可能对应不同数据,引用具体时间参数时宜以原文对应部分为准。
与 liveDRIM 的关联
本文使用的是 RIM 方法,而非商业化 liveDRIM 整机。 方法部分写明:3D + t 活细胞 RIM 采用 Mangeat 等(2021)系统的升级版,基于 Nikon TEi 倒置显微镜、100×/1.49 NA 物镜、ORCA-Fusion sCMOS 相机、Oxxius 488 nm 激光与二元相位空间光调制器(SLM),由商业采集软件 INSCOPER 控制;每个平面 48 个随机照明图案,单个全细胞 3D 时间点约 6 s 完成,激发强度约 1 W/cm²(作者称为低漂白条件);重建使用开源 algoRIM(github.com/teamRIM/tutoRIM)。RIM 采集与分析由 Thomas Mangeat 完成。
与产品的技术同源。 liveDRIM 是 Rimeo(RIM 方法团队成员创立)、Gataca Systems 与 INSCOPER 将 RIM 产品化的方案,INSCOPER 官方文献库将本文归入“Super-Resolution (DRIM)”类别;本文可以视为 RIM 技术路线在细胞核动态研究中的应用实例。
对应用场景的启示。 本文展示的是一类典型需求:在活细胞核内以三维、超分辨、较低光剂量的方式跟踪亚微米级结构(修复灶)在数十分钟内的融合。对于 DNA 损伤修复、核内凝聚体、染色质组织等课题,这类需求与 RIM / liveDRIM 的设计取向相符;但具体分辨率、速度与光毒性表现,需要结合实际样本与配置评估。
原文信息
题名:Chromatin compartmentalization regulates the response to DNA damage
作者:Coline Arnould, Vincent Rocher, Florian Saur, …, Thomas Mangeat, …, Aline Marnef, Gaëlle Legube
期刊:Nature 623, 183–192(2023)
许可:CC BY 4.0
本文为对原文的解读,非作者官方译文。
中国区合作伙伴
北京欧浩科技有限公司(Oriental Horizon Technology)为 INSCOPER / liveDRIM 中国区合作伙伴。
咨询:张女士,judy.cheung@ohhktech.com,13511029964