

全文约 4,801 字,阅读约需 14 分钟
文献来源(学术 RIM 方法扩展;INSCOPER 同步出现在方法中)
Mangeat, T., Mazzella, L., Rogez, B., Giroussens, G., Li, X., Bernard, M., Vargas, P., Allain, M., Labouesse, S., Idier, J., LeGoff, L., Sentenac, A. Super-resolved live imaging of thick biological samples with 3D Random Illumination Microscopy (3D-RIM). bioRxiv preprint (2025).
DOI:https://doi.org/10.1101/2025.08.06.668879
图片使用说明:文中插图来自该预印本(bioRxiv,作者/资助方持有版权;页面与 PDF 标注为 Creative Commons CC BY-NC-ND 4.0),未作内容改动;转载时保留作者、预印本平台与 DOI。该许可为非商业、禁止演绎,若用于商业站点发布请自行核对合规性。预印本未经同行评审。
导语
厚组织、胚胎和类器官的三维超分辨,一直卡在两件事上:样品引起的像差与散射会破坏结构化照明图案;焦外荧光又会把对比度“冲掉”。法国图卢兹 CBI(LITC)与马赛 Institut Fresnel 等团队合作,在 随机照明显微术(Random Illumination Microscopy, RIM) 框架上提出 三维随机照明显微术(3D-RIM):用散斑照明、探测臂远程聚焦、三维光子重分配与三维方差匹配,在薄样品上达到约 110 nm(横向)/ 270 nm(轴向)的分辨率,并在数十微米乃至数百微米深度的组织中保持较高对比度。需要强调:本文是学术方法预印本,不是商业 liveDRIM 整机评测。
研究背景:为什么厚样本里“图案照明”会失效
常规宽场对焦外背景敏感;共聚焦、周期性结构光照明显微术(structured illumination microscopy, SIM)与光片等方法则依赖照明图案的完整性——样品越厚,激发侧的散射与像差越明显,分辨率随深度下降。RIM 用一系列随机散斑(speckle)照明,从多幅图像的方差重建超分辨结构,不必精确知道每一张散斑的形状,因此对激发侧像差相对鲁棒。此前 2D-RIM 已在活细胞等场景展示约两倍于宽场的横向分辨。要把 RIM 做成真正的三维体积成像,作者指出关键在于:记录低分辨三维栈时,样品相对散斑照明不能移动,否则成像模型不再是三维卷积,后续的全局三维处理就无法成立。
方法:远程聚焦 + 3D Wiener + 3DalgoRIM
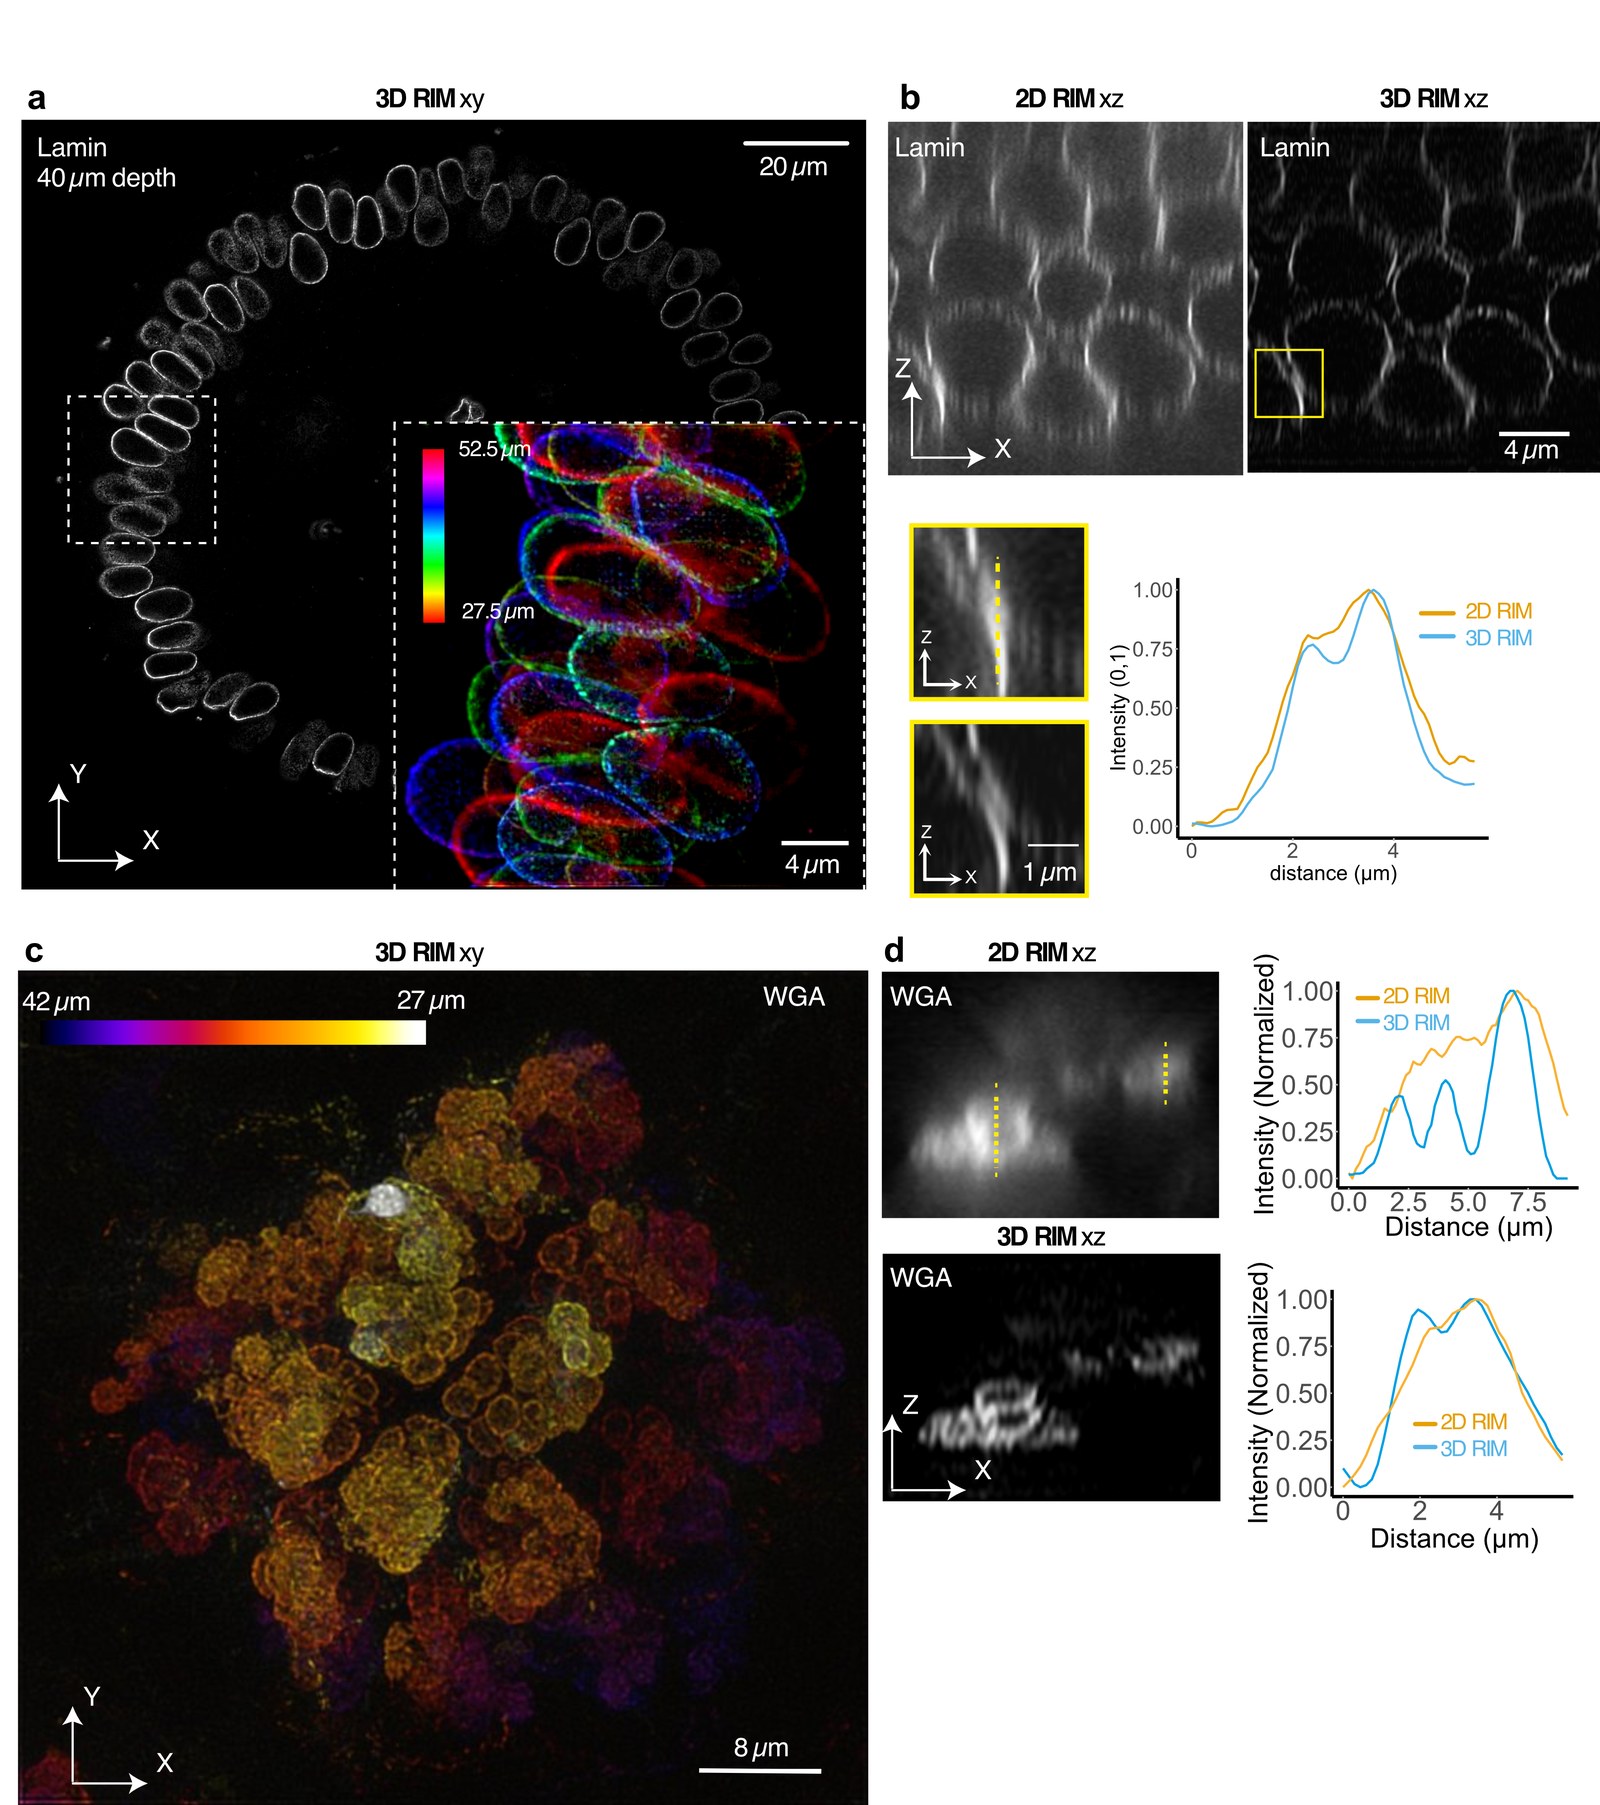
图1.3D-RIM 在单细胞层面的示意与结果。a:散斑照明样品;探测臂用电调焦透镜(electrically tunable lens, ETL)做远程聚焦,在照明不变的前提下采集 z 栈;对约 100–200 组三维散斑图像做方差匹配重建。b:活体肺炎链球菌 FtsZ:GFP 分裂环的 xz 切面,3D-RIM 相对反卷积宽场可更好显示环孔(环总直径可至约 230 nm)。c:固定 Hep3B 细胞核 DNA(样品厚约 15 µm),3D-RIM 相对反卷积宽场对比度更高;深度编码最大强度投影;作者用傅里叶环相关(Fourier ring correlation, FRC)估计横向约 110 nm、轴向约 270 nm。
来源:原文 Figure 1;Mangeat et al., bioRxiv 2025;https://doi.org/10.1101/2025.08.06.668879(CC BY-NC-ND 4.0)
硬件与采集要点:
平台:标准 Nikon TiE 倒置荧光显微镜;空间光调制器(SLM)产生散斑;相机为 Teledyne Kinetix;同步与采集由商业 Inscoper L 电子/软件系统完成。
远程聚焦:在探测 4f 系统傅里叶面放置 ETL,轴向扫描时样品相对照明图案不动,从而满足三维卷积模型。
采集顺序:同一焦面先采完 P 张散斑,再换 z;固定样 P≈200,活体 P≈100;单平面曝光约 10 ms;z 步长依样品在约 90–250 nm。
重建(3DalgoRIM):先对原始三维图像做三维 Wiener 滤波(把焦外光子“重分配”回源点,放大散斑热点、抬高方差信噪比),再迭代匹配经验标准差与理论模型,并加 Tikhonov 正则;正则参数 ε、µ 需手动调节。作者用点扩散函数生成器(Gibson–Lanni 模型)估计显微镜点扩散函数 h 与散斑自相关 Γ;理论标准差计算借助算子谱截断(实践中前约十项通常足够)。对比用的“常规 RIM / 2D-RIM”则是把各平面独立按二维处理后再堆叠。
主要结果
1. 薄样品:可与 3D-SIM 相比的分辨
在活体细菌 FtsZ 环与固定人细胞染色体上,3D-RIM 轴向切面与对比度明显优于反卷积宽场;当分裂环整体直径收缩到约 230 nm 时,环内孔仍可被提示。对约 15 µm 厚的 Hep3B DNA 样品,FRC 给出约 110 nm(横向)/ 270 nm(轴向)。作者据此认为,在薄样品上 3D-RIM 可达到与 3D-SIM 相当的分辨水平。
2. 厚组织:果蝇胚胎与小鼠肠——背景更干净、轴向更好
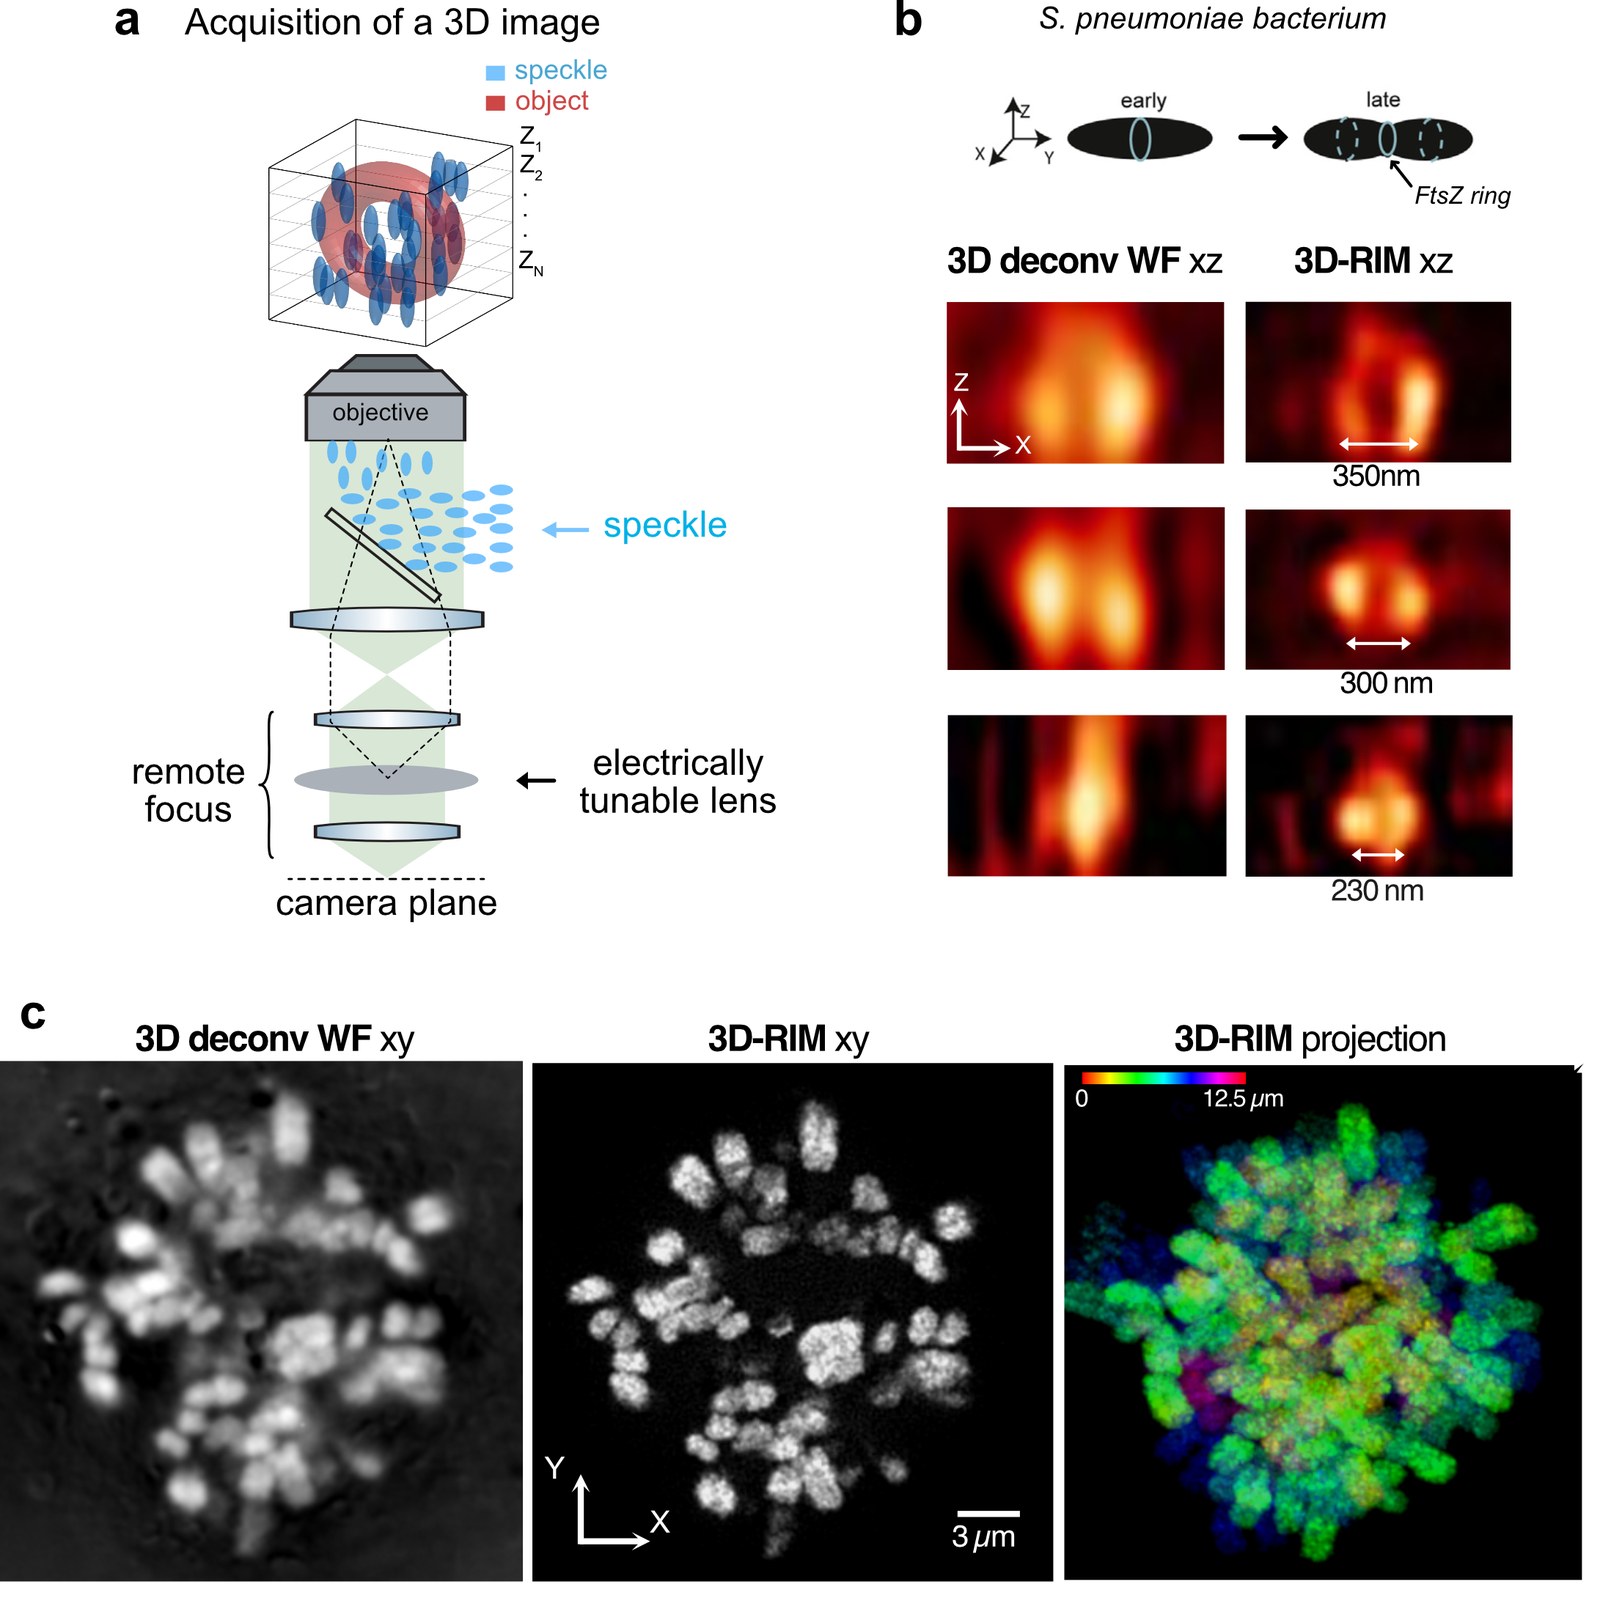
图2.厚组织成像。a、b:果蝇胚胎 lamin 免疫染色(核被膜);成像深度约 27–52 µm;a 为距盖玻片约 40 µm 的大视场 xy 切面及深度编码投影;FRC 约 180 nm / 450 nm。b:同一区域 xz,3D-RIM 相对逐层 2D-RIM 堆叠对比度更高、轴向线轮廓更锐。c、d:小鼠肠 Paneth 细胞 WGA–罗丹明标记分泌颗粒膜,深度约 27–42 µm;FRC 约 230 nm / 470 nm;密集标记下 2D-RIM 受焦外噪声拖累,3D-RIM 可勾勒单个颗粒外形。
来源:原文 Figure 2(CC BY-NC-ND 4.0)
相对“逐层做 2D-RIM 再堆栈”,全局三维处理利用了焦外光子信息与三维点扩散函数、散斑统计,光学切片与去背景更有效。肠组织因分泌颗粒密集、隐窝几何复杂,散射与像差更强,也更能体现三维方差重建相对平面堆叠的优势。
3. 胶原支架中的树突细胞:深至约 450 µm 仍有对比
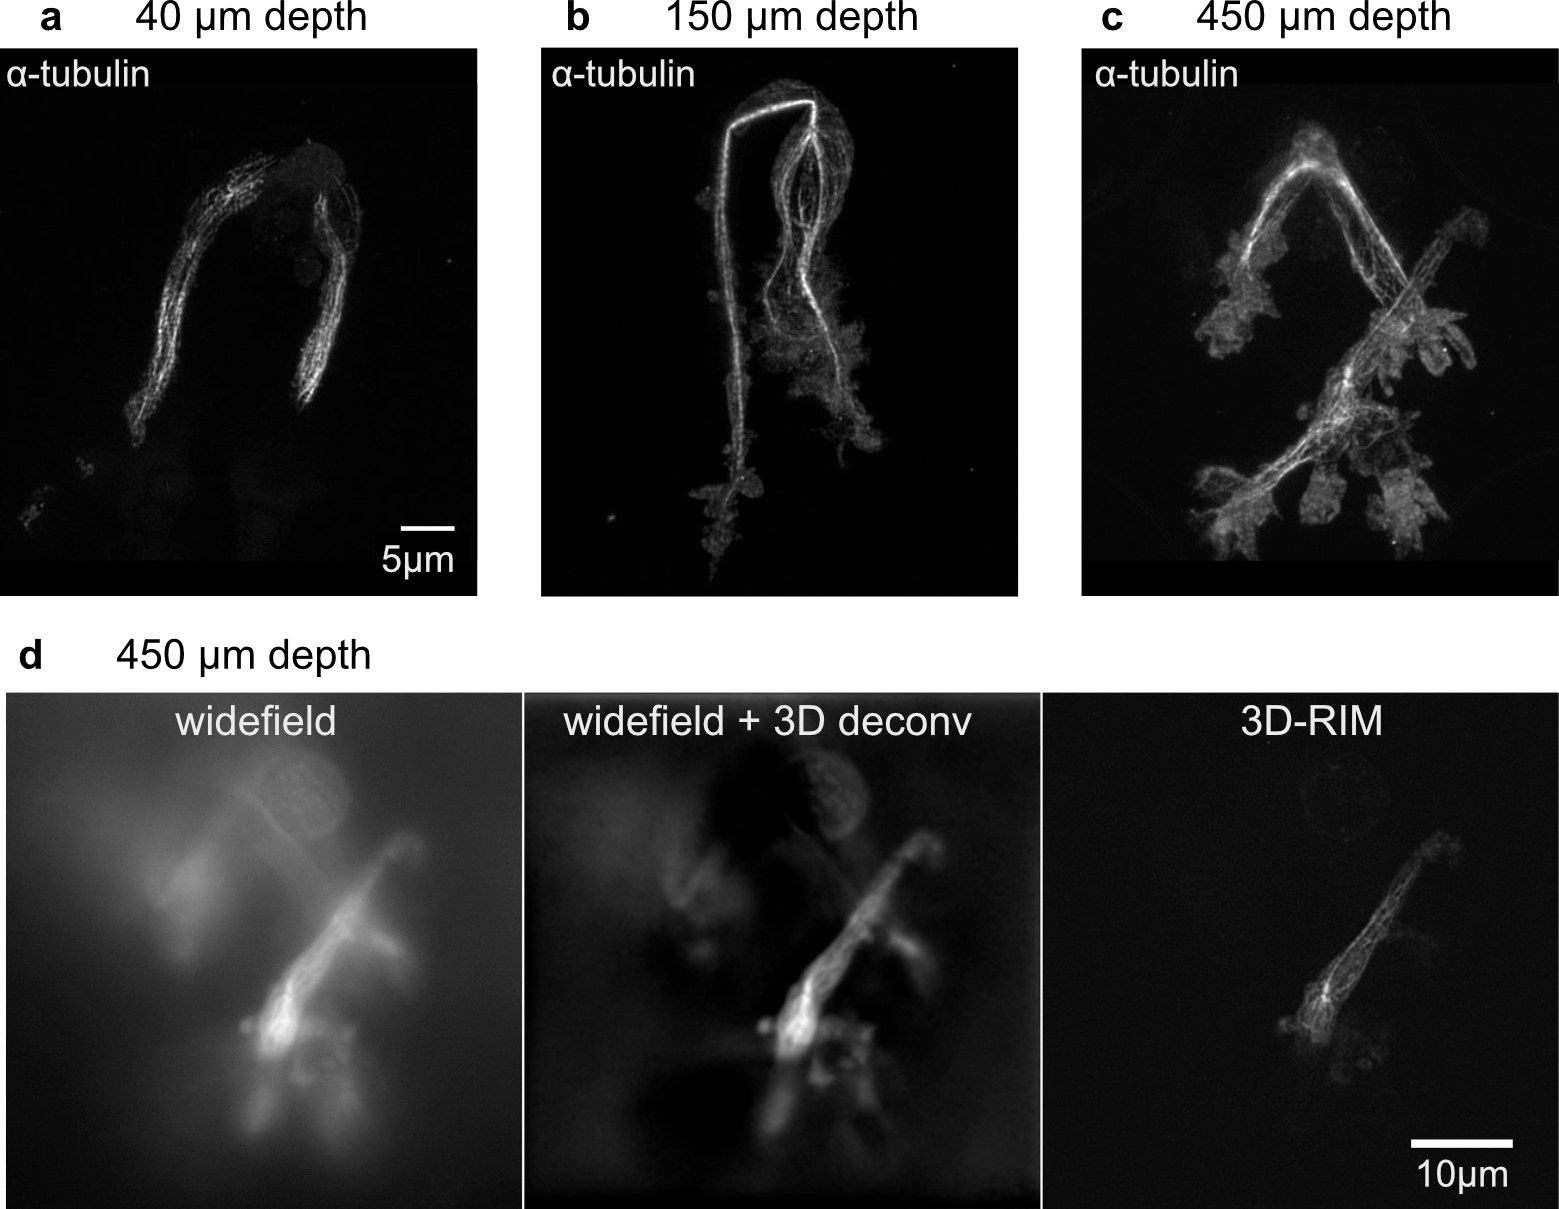
图S1.小鼠骨髓来源树突细胞在胶原凝胶中迁移后的 α-tubulin 免疫荧光;最大强度投影,深度约 40、150、450 µm。作者报告横向分辨约 330 nm;轴向由约 750 nm(40 µm)至约 1 µm(150 与 450 µm)。同一切面相对宽场及反卷积宽场,3D-RIM 背景更低;反卷积宽场横向约 660 nm。
来源:原文 Supplementary Figure S1(CC BY-NC-ND 4.0)
4. 活体:果蝇卵室 border cells 约 30 min、深至约 65 µm
固定卵室(约 33–46 µm)中,border cells 簇内单根肌动蛋白纤维束可被分辨;活体卵室中,作者追踪 border cells 迁移末期的 actin 动态突起,全过程约 30 分钟、深度可达约 65 µm,体积图像间隔约 3 分钟,作者报告无明显漂白与光毒性迹象(补充图 S2 及视频 7–9)。这说明在作者所选标记与曝光条件下,三维散斑采集与 3DalgoRIM 重建可以用于数十微米深处活体样品的体积时序观察。需要注意,作者展示的活体时序为 8 个体积图像、相邻间隔约 3 分钟(活体标记为 slbo::LifeAct–RFP,激发波长 561 nm,物镜数值孔径 1.3,每个焦面采集 100 张散斑图像,z 步长 250 nm)。这是我们的推断:该数据反映的是分钟级的组织迁移过程,并非秒级的快速动态。
5. 补充:各样品的成像条件
作者使用四条激光(405、488、561、633 nm)激发;物镜依样品分别为 60× 硅油物镜(数值孔径 1.3,用于 Hep3B 细胞、果蝇胚胎、小鼠肠 Paneth 细胞与果蝇卵室 border cells)、100× 油浸物镜(数值孔径 1.49,用于 FtsZ 环)以及 40× 水浸物镜(数值孔径 1.15,用于胶原凝胶中的树突细胞)。重建中,正则参数 ε 在 5×10⁻⁴ 至 2×10⁻³ 之间、µ 在 1.6×10⁻⁷ 至 6×10⁻⁶ 之间,迭代 50–100 次收敛。作者特别指出,重建仅使用标准 Tikhonov 正则。
结论与意义
作者的结论是:3D-RIM 将全局三维数据处理的效率,与 RIM 对激发侧像差的鲁棒性、较低光毒性及在活体样品上的易用性结合起来,可为厚生物样品提供对比度良好的超分辨体积图像,并为在发育中的胚胎、类器官等完整组织内研究亚细胞结构与动态提供新的可能。
这是我们的推断:本文最关键的工程要点在于“样品相对散斑照明不动”这一前提——轴向扫描改由探测臂远程聚焦完成,三维卷积成像模型才得以成立,焦外光子也由此从“背景”转化为可用于三维光子重分配的信息。这一思路与逐层二维处理后再堆叠的做法有本质区别,图2 中两者的对比即体现了这一点。
与 INSCOPER liveDRIM 的关系
原文方法部分记载,3D-RIM 实验中的同步与采集由商业 Inscoper L 电子/软件系统完成。而散斑生成所用的空间光调制器、远程聚焦单元(4f 中继透镜与 Optotune 电调焦透镜)以及 3DalgoRIM 重建算法,在原文中均作为作者团队的学术实现进行描述;原文并未说明这些部分已纳入商业 liveDRIM 系统。因此,本文所述的三维体积成像能力应理解为 RIM 方法路径上的学术进展;liveDRIM 系统当前实际提供的功能、配置与指标,应以 INSCOPER 正式产品资料为准。
局限与注意事项
预印本未经同行评审:当前为 bioRxiv v2,作者注明该版本补充了 Xiangyi Li 在 3D-RIM 重建方法上的算法改进;后续版本或正式发表时内容可能变化。
分辨率数值依赖具体样品与条件:文中分辨率多由傅里叶环相关估计,胶原凝胶中树突细胞的数值则依据最细纤维的半高全宽估计;这些数值对应特定样品、物镜与标记,不宜直接视为系统规格。另外,原文正文称 FtsZ 环整体直径接近 300 nm 时仍可见中央孔,而图1 图注所述为 230 nm,两处表述不一致。
深度与活体需区分:约 450 µm 深度的数据来自固定的树突细胞样品;活体数据中报告的最大深度约为 65 µm。
采集量与参数调节:每个焦面需采集 100–200 张散斑图像,这是我们的推断:体积成像的时间分辨率会因此受限(作者亦指出,变换焦面是时序采集中的限制因素);正则参数 ε、µ 需依原始图像信噪比手动调节。
方法属性:本文为学术方法研究,不是商业 liveDRIM 系统的评测;仅 INSCOPER 实际提供的部分可作为产品能力介绍。
原文信息
Super-resolved live imaging of thick biological samples with 3D Random Illumination Microscopy (3D-RIM)
作者:Thomas Mangeat, Lorry Mazzella, Benoît Rogez, Guillaume Giroussens, Xiangyi Li, Mathilde Bernard, Pablo Vargas, Marc Allain, Simon Labouesse, Jérôme Idier, Loïc LeGoff, Anne Sentenac
平台:bioRxiv preprint;当前版本 v2(约 2025-09-16 posted)
全文:https://www.biorxiv.org/content/10.1101/2025.08.06.668879v2.full
许可:CC BY-NC-ND 4.0
本文为对原文的解读,非作者官方译文。预印本内容可能更新。
中国区合作伙伴
北京欧浩科技有限公司(Oriental Horizon Technology)为 INSCOPER / liveDRIM 中国区合作伙伴。
咨询:张女士,judy.cheung@ohhktech.com,13511029964